Виртуальная реконструкция скелета
позвоночных, используемая для визуализации и функционального анализа объекта
позволяет извлечь более полную информацию о биологической роли целостной
конструкции и адаптивного смысла ее преобразований, что является весомым дополнением
к классическим морфометрическим методам исследования. Известно, что ведущим
фактором, определяющим формообразование костной ткани, является силовая
нагрузка, изменяющаяся в ходе онто- и филогенеза [1, 2], что свидетельствует о
том, что адаптивная «деформация» кости происходит в местах наибольшего
напряжения. В связи с этим становится открытым вопрос о локализации и
распределении напряжений и деформаций в объекте заданной формы. Одним из
современных методических подходов, позволяющим приблизиться к решению данной
проблемы является определение напряженно-деформированного состояния костной
ткани под воздействием внешних сил. Наиболее широко применяемым в настоящее
время математическим методом прочностного расчета конструкций является метод
конечных элементов, который дает возможность выявлять напряжения и деформации в
объекте любой формы и геометрии, при заданных нагрузках и механических
характеристиках исследуемого объекта. К настоящему моменту использование
данного подхода позволило произвести виртуальную реконструкцию скелета некоторых
видов крупных млекопитающих и вымерших пресмыкающихся, а также проанализировать
аспекты их функциональной и эволюционной морфологии [3-17]. На основе опыта предыдущих
исследователей нами была разработана и апробирована методика пошаговой сборки
сечений томографа и создание виртуальной конструкции скелета рыб, что позволяет
получить первичные данные о механическом поведении костной ткани этой группы
позвоночных [18, 19]. Настоящая работа является продолжением начатых исследований,
и посвящена применению метода конечных-элементов для анализа адаптивных преобразований челюстного
аппарата рыб.
Основные
этапы моделирования КЭМ висцерального скелета рыб были подробно представлены в
предыдущих работах [18, 19]. В настоящем исследовании для полноценного представления
применения КЭМ для изучения адаптивных преобразований челюстного аппарата рыб представлен
алгоритм и краткое описание основных этапов создания модели для тестирования
(рис. 1).
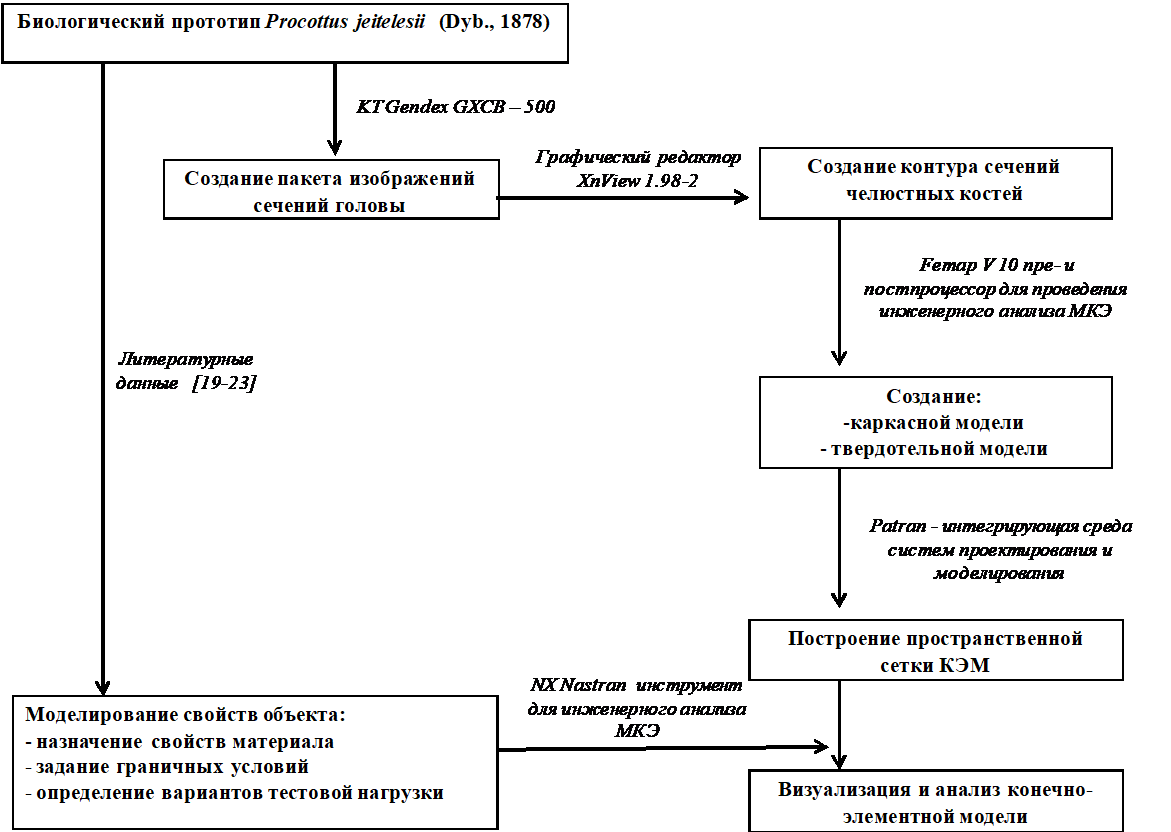
Рис. 1
Алгоритм создания и анализа КЭМ челюстного аппарата рыб [19].
Создание КЭМ челюстного аппарата рыб. Биологическим прототипом создаваемой модели являлся коллекционный экземпляр байкальской эндемичной ихтиофауны
– Procottus jeitelesii (Dyb., 1878). Сканирование объекта производили с помощью аппарата конусно-лучевой объёмной томографии Gendex GXCB-50
(https://angarsk-stomklinika.ru) в
вертикальном положении от симфизиса до заднего края жаберной крышки. Параметры кадра изображения составляли 216×216 мм с шагом сечения 0.4 мм. Визуализация
результатов послойного сканирования черепа рыбы осуществлялось с помощью программного обеспечения для визуализации данных компьютерной томографии челюстно-лицевой
зоны iCATVision 1.8 [20]. Исходные материалы были представлены растровыми изображениями формата jpeg размером 312×312 пикселей (рис.2 а). Всего было получено и
проанализировано 106 изображений сечений головы.
Создание КЭМ челюстного аппарата рыб. Анализ
полученных сечений был произведен с помощью цветной RGB модели в
программе просмотра и редактирования изображений XnView 1.98.2 [21]. Контуры
объекта были созданы путём векторизации точек в цветовом градиенте на границе
фона и сечения кости (рис.2 а). Для последующей обработки данных в программах
инженерного анализа, полученные изображения контуров сечения были переведены в
формат dxf и neu.
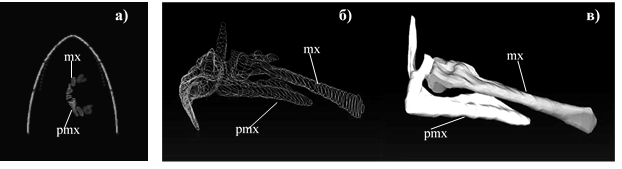
Рис. 2.
Создание твердотельной модели верхнечелюстных костей рыб (P. jeitelesii): а) контур костей в растровом изображении КТ сечений головы; б) каркасная модель; в) твердотельная модель. Обозначения основных элементов: mx – верхнечелюстная кость, pmx – предчелюстная кость.
Сборка контуров сечений в каркасную модель осуществлялась в системе Femap V 10 [22] (рис. 2 б). С помощью пакета команд для геометрического моделирования (Parasolid, Standard) каркасные модели были трансформированы в твердотельные аналоги (рис. 2 в). Необходимые элементы костей висцерального скелета и мускулатуры были реконструированы на основе визуализации фиксированных препаратов головы рыб в программе трехмерного моделирования и анимации Autodesk Maya 2012 [23] (рис. 3 а, б). Достоверность геометрических параметров полученной модели достигалась посредством использования морфометрических данных исследуемого объекта. Генерация сетки конечных элементов в твердотельной модели реализована в интегрирующей среде систем проектирования и моделирования Patran [24].
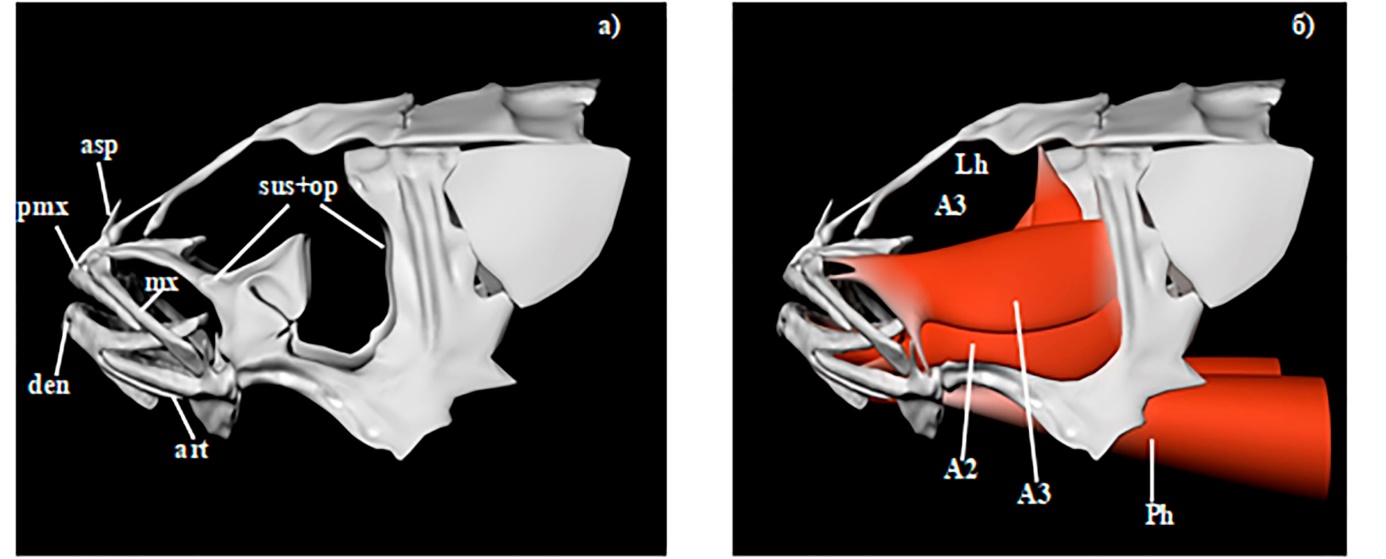
Рис. 3
а) Трехмерная твердотельная конструкция висцерального скелета рыб (вид сбоку); б) Трехмерная костно-мышечная конструкция висцерального отдела черепа рыб (вид сбоку). Обозначения основных элементов: Кости: art – anguloarticulare, den – dentale, mx – maxillare, op+sus – комплекс suspensorium + operculum, pmx – praemaxillare (asp - восходящий отросток pmx). Мускулатура: А1, А2, А3 – порции m. adductor mandibulare, Lh – m. levator hyomandibulare et arcus palatini, Ph - m. protractor hyoidei.
Условия
для тестирования КЭМ.
Основной задачей настоящей работы являлось
определение и визуализация НДС в объекте заданной формы, независимо от свойств
его материала. Локализация и направление приложения тестовой нагрузки были
определены на основе литературных данных, характеризующих морфофункциональные
особенности челюстного аппарата рыб [25-28]. Сосредоточенные силы были приложены в ключевых узлах,
располагающихся в местах прикрепления ведущих элементов мышечно-связочного
аппарата головы, продемонстрированных на костно-мышечной виртуальной
конструкции (рис 3 б). Дополнительно были смоделированы нагрузки, симулирующие
давление жертвы на зубную поверхность praemaxillare и dentale. Направление
векторов мышечных сил заданы согласно полученным ранее данным тестирования
кинематических моделей челюстного аппарата рыб [29].
При
назначении свойств материала были использованы данные о механических
характеристиках костной ткани лобной кости пресмыкающихся (Е = 5600 Па – модуль упругости, m = 0.29 – коэффициент
Пуассона), что связано с отсутствием данных о механических характеристиках рыб [19]. Для выявления зон максимальных
напряжений и потенциальных деформаций к исследуемой модели была приложена
минимальная нагрузка (10 Н на один узел).
Для
анализа конечно-элементных моделей с помощью решателя в программе Nastran [30]
был проведен статический расчет с учетом наложенных граничных условий и
вариантов выбранных нагрузок.
На
основе анализа НДС полученных объектов были определены зоны потенциальных
адаптивных деформаций при положении ротового аппарата в двух позициях: 1)
«подготовка к захвату добычи» (открытие рта и выдвижение praemaxillare)
и 2) «захват добычи» (закрытие рта) (рис. 4, 5). Визуализация расчетов НДС
производилась в среде Patran, в соответствии с цветовой шкалой,
характеризующей распределение полей напряжения в представленных объектах.
Позиция «Подготовка к захвату добычи»:
Механизм открытия рта обеспечивается
функционированием крышечной мускулатуры, воздействующей через l. mandibulo-operculare angular на dentale в области симфиза, что
способствует ее вертикальному перемещению вниз. Нижнечелюстной блок опускается
и перемещает соединенные с нею через l. maxilla-mandibulare anterius вентральные концы
praemaxillare и maxillare вниз. С помощью порции m. adductor mandibulae А1
производится силовое воздействие на краниальную часть maxillare, в результате которого она выталкивает вперед
praemaxillare, который подвижно сочленен с этмоидальным отделом неврокрания [25-28]
Локализация и распределение НДС при открытии рта для каждой из челюстных костей
выглядели следующим образом (рис. 4):
• Praemaxillare в результате пассивного выброса за счет воздействия maxillare испытывает
напряжение сжатия, в зоне их непосредственного контакта (область сочленового отростка);
• Maxillare испытывает напряжения от осевого усилия, что является результатом воздействия
порции m. adductor mandibulae А1, прикрепляющейся в районе суставной
головки; область наибольших напряжений располагается в зоне сжатия
(сопротивление латеральному изгибу), расположенной с внутренней стороны кости;
• Dentale испытывает локальное напряжение растяжения в области прикрепления
l. maxilla-mandibulare, опускающей нижнюю челюсть вниз;
• Anguloarticulare испытывает наибольшее напряжение растяжения у основания верхнего отростка, в
результате сопротивления дорсо-вентральному изгибу нижнего отростка, возникающему
под воздействием сил растяжения со стороны dentale (контакт anguloarticulare-dentale).
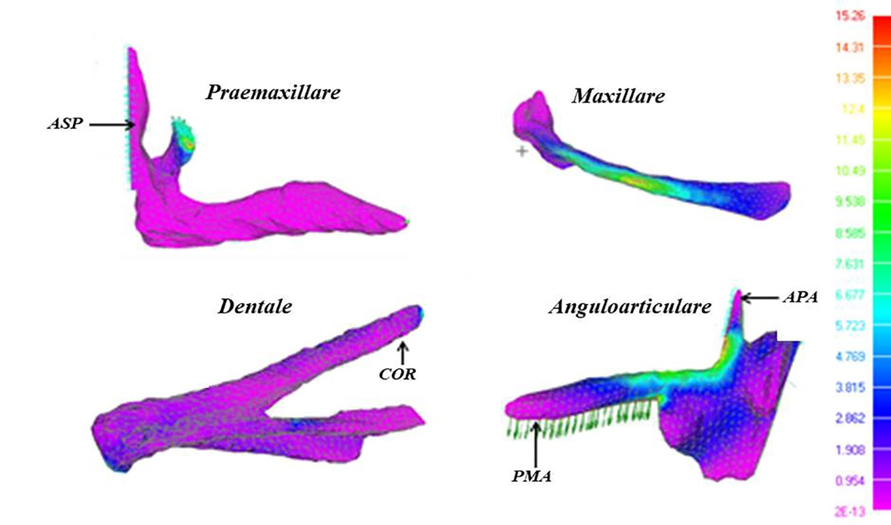
Рис. 4.
Поля напряжений на поверхности КЭМ челюстных костей в позиции «открытие рта»: Praemaxillare, asp – восходящий отросток; Dentale, cor – короноидный отросток; Anguloarticulare, apa – верхний отросток, pma – нижний отросток
Примечание: зеленые стрелки - локализация и направление прилагаемых сил; голубые стрелки – граничные условия.
2. Позиция «Захватдобычи»: Закрытие
рта осуществляется посредством комплекса m. adductor mandibulare, начинающемся в
заглазничном отделе висцерального скелета; далее пучки прикрепляются в районе
верхнего отростка anguloarticulare
(А2) и короноидного отростка dentale (А1, А2, А3 и Aw). Комплекс аддукторов, воздействуя на отростки, перемещает
нижнюю челюсть вверх. Нижняя челюсть, поднимаясь, через l. maxilla-mandibulare anterius
тянет вентральные концы praemaxillare и maxillare, и возвращает их в предыдущую позицию [20-23]. Локализация и
распределение НДС при захвате добычи и закрытии рта для каждой из челюстных
костей выглядели следующим образом (рис. 5):
• Praemaxillare под давлением
удерживаемой добычи испытывает напряжение сжатия в горизонтальной плоскости
кости, в результате ее сопротивления латеральному изгибу; максимальные
напряжения сжатия концентрируются в области верхнего отростка, подвергающегося
дорсо-вентральному изгибу;
• Maxillare испытывает те же
нагрузки, как в предыдущем варианте, в связи с воздействием аналогичных сил;
• Dentale испытывает
максимальные напряжения в области короноидного отростка, за счет сопротивления
деформациям, типа «кручение», которые являются результатом совокупности
приложения нескольких разносторонних сил: сжатие со стороны зубной поверхности
(сопротивление жертвы), растяжение отростка со стороны комплекса m. adductor mandibulae
и сжатия, возникающего в результате сопротивления нижнего отростка
anguloarticulare;
г) Anguloarticulare испытывает наибольшее двустороннее напряжение у основания верхнего отростка, в
результате его сопротивления дорсо-вентральному изгибу, возникающему под
воздействием сил растяжения со стороны порции m. adductor mandibulae А2;
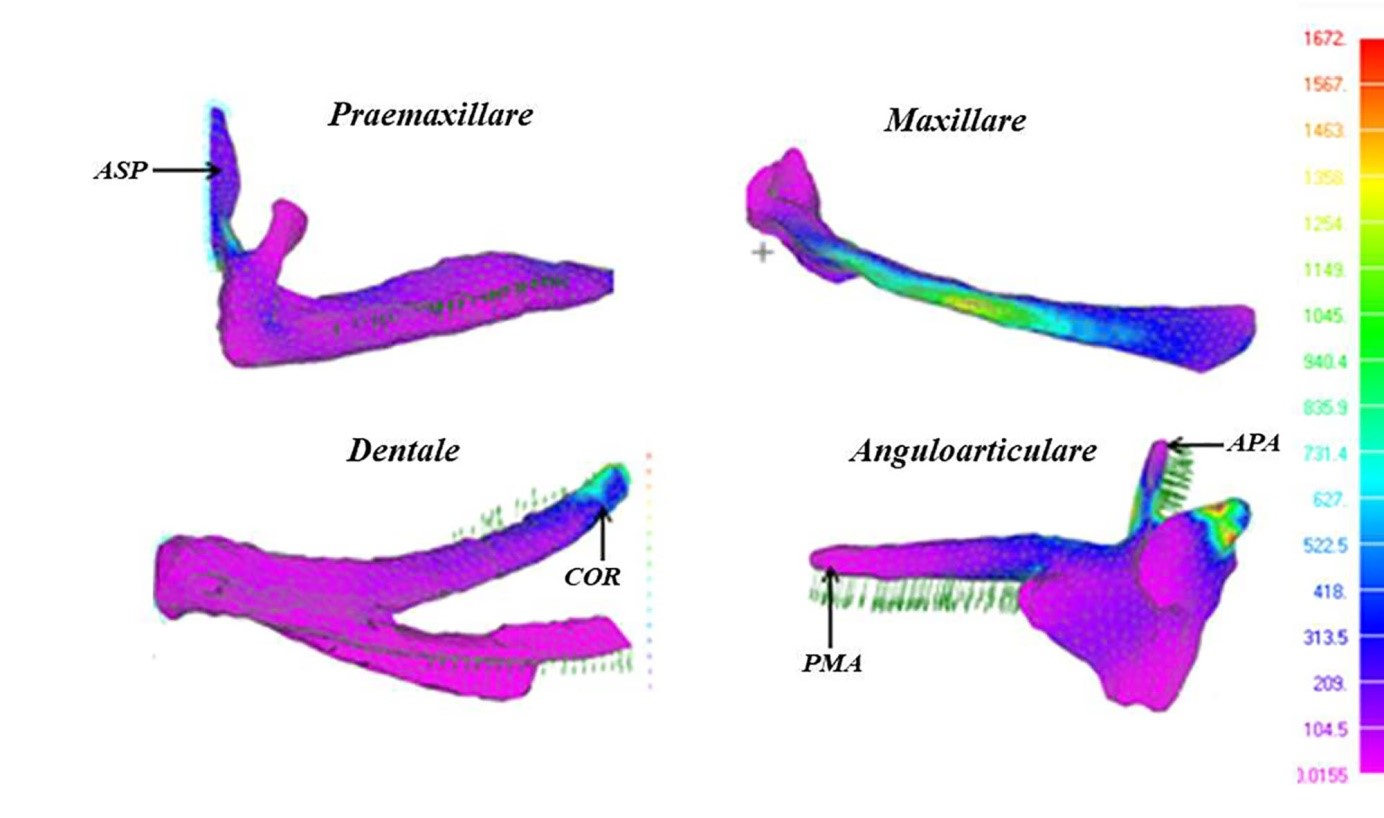
Рисунок 5. Поля напряжений на
поверхности КЭМ челюстных костей в позиции «закрытие рта»: Praemaxillare, asp - восходящий
отросток; Dentale, cor - короноидный отросток; Anguloarticulare, apa верхний отросток,
pma - нижний отросток. Примечание:
зеленые стрелки - локализация и направление прилагаемых сил; голубые стрелки –
граничные условия.
Функциональный анализ структурных преобразований пищедобывательного аппарата неразрывно связан с вопросами формирования трофической стратегии конкретного вида. Анализ многочисленных литературных данных, показывает, что ведущей тенденцией морфологической изменчивости внутри большинства семейств рыб является удлинение челюстей и редукция выдвижения рта, что связано с увеличением размера кормовых объектов и частичным переходом к ихтиофагии [30-35]. Данная тенденция была отмечена ранее для группы близкородственных видов прибрежных Cottoidei, демонстрирующих последовательную смену трофической адаптации от бентофагии к ихтиофагии (в направлении: Paracottus knerii - Leocottus kesslerii - Batrachocottus baicalensis) [34]. С помощью графической визуализации морфометрических данных челюстных костей была выявлена и продемонстрирована взаимосвязанная изменчивость ряда морфогеометрических параметров (рис. 6). Установлено, что основной тенденцией при переходе от бентофагии к ихтиофагии является удлинение челюстей и уменьшение их горизонтальных параметров, в частности уменьшение высоты восходящего отростка praemaxillare - АС (от 80.7 до 51,6 в % длины кости), уменьшение угла между плоскостью anguloarticulare и ее верхним отростком - ∠CDA (от ∠880до ∠660), уменьшение высоты dentale - BC (от 43.4 до 35.4 в % длины кости) (рис. 6).
Известно, что перестройка
формы кости происходит в местах наибольшего напряжения, которое является
следствием воздействия мышечно-связочного аппарата [1]. Результаты настоящего
исследования согласуются с полученными ранее данными. Как было показано выше,
поля максимальных напряжений имеют тенденцию концентрироваться в местах,
подвергающихся наибольшей модификации, в частности в области челюстных
отростков, выполняющих роль креплений для мышц и связок.
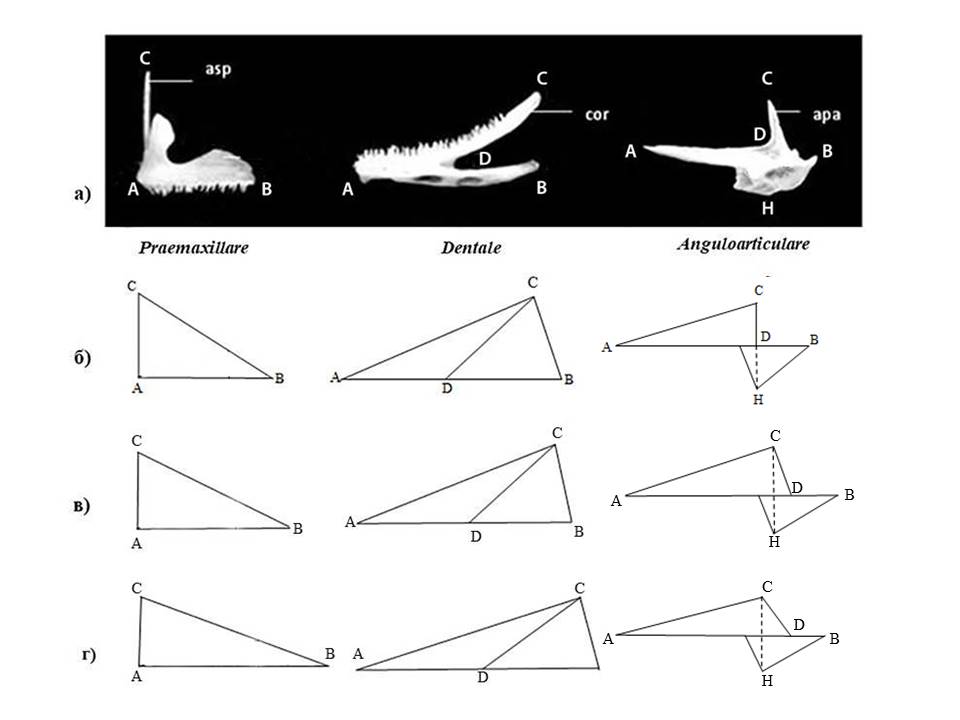
Рис. 6. Геометрические
проекции костей челюстного аппарата байкальских керчаковых рыб литоральной
группы (Cottoidei): а) схема промеров (в % длины кости; б) P. knerii; в) L. kesslerii;
г) B. baicalensis [35]; Обозначения: Praemaxillare: asp – восходящий отросток, (АВ – длина кости,
AC – высота asp); Dentale: cor – короноидный отросток (АВ – длина кости, BC – высота, AC – расположение
заднего конца короноидного отростка, DC - длина короноидного отростка);
Anguloarticulare: apa – верхний отросток (АВ – длина кости, AD – расположение основания верхнего отростка,
CD – длина верхнего отростка, СН – высота кости, ∠CDА- угол, образованный верхним отростком и плоскостью кости).
Согласно экспериментальным
данным, для эффективного захвата кормовых объектов верхняя челюсть рыб выдвигается
вперед, что происходит в результате скольжения восходящих отростков
praemaxillare вдоль этмоидальной части черепа [26-34]. Очевидно, что максимальная
силовая нагрузка при захвате добычи, приходится на восходящие отростки
praemaxillare аналогично «перераспределения опорной нагрузки стопы на концентрацию в
области каблука». Соответственно, при удлинении praemaxillare и площади
«опоры» у хищников, давление на восходящие отростки возрастает, что
обуславливает их постепенную редукцию (рис. 4-6).
При удлинении
челюстей у ихтиофагов, требуется больше усилий на открывание/закрывание рта [1].
Этот процесс осуществляется с помощью порций A2 и AW
комплекса m. adductor mandibulae, которые прикрепляются к внутренней стороне тела
anguloarticulare
и ее верхнему отростку [26, 27]. Нарастающая силовая нагрузка со стороны
мускулатуры приводит к модификации формы anguloarticulare.
Так, в случае «перпендикулярного» расположения отростка у бентофагов, силы
m. adductor mandibulae A2 однонаправленны с поперечным сечением и действуют,
преимущественно, на продольную ось (рис. 6). Последовательное уклонение
верхнего отростка к плоскости anguloarticulare при переходе к ихтиофагии,
ведет к перераспределению напряжения между его продольным и поперечным
сечениями за счет их смещения относительно направления сил, и соответственно,
снижает риск возникновения необратимых деформаций при увеличении нагрузки (рис.
5). Перемещение верхнего отростка anguloarticulare в горизонтальное
положение, обуславливает уменьшение высоты dentale, контактирующей с ней
в области короноидного отростка, испытывающему комплексное воздействие со
стороны комплекса m. adductor mandibulae и захваченной добычи.
Развитие методов виртуальной реконструкции
анатомических структур позволяет визуализировать и установить скрытые
закономерности преобразования скелета и его отдельных элементов, не всегда
очевидных при использовании классической морфометрии. Большой интерес при
исследовании вопросов адаптивной изменчивости челюстного аппарата различных
таксонов позвоночных животных представляет функциональный анализ и визуализация
изменчивости формы скелетных структур и прогнозирование его поведения под
воздействием внешних сил. В настоящей работе для решения задачи напряженно-деформированного
состояния объекта был применен один из современных математических подходов –
метод конечных элементов. Разработка и визуализация КЭМ челюстного аппарата рыб
позволили визуализировать и выявить локализацию участков с наибольшим
напряжением в условиях имитационной нагрузки. На основе полученных результатов
было установлено, что структурные изменения происходят в местах концентрации
максимального напряжения кости, при этом наибольшей деформации подвергаются
челюстные отростки, играющие ключевую роль при функционировании ротового
аппарата рыб. Очевидно, что
особенности преобразований костей челюстного аппарата у различных видов рыб
являются следствием неравномерного воздействия силовой нагрузки, изменяющейся в
ходе адаптации к питанию различными группами организмов.
Полученные на настоящем этапе исследования
результаты нуждаются в дальнейшем развитии, в частности в определении
механических свойств костного материала рыб и его интегрировании с особенностями
изменчивости формы объекта под нагрузкой.
1. Wolff.J. Das Gesetz der Transfomation der Knochen. Berlin:Hirshwald. 1892. 235p.
2. Cowin S.C. Wolff’s law of trabecular architecture at remodeling equilitrium. J. Biomech. Engng. 1986. V. 108. P. 83-88.
3. Dumont E.R., Grosse I.R., Slater G.J. Requirements for comparing the performance of finite element models of b Biological structures. J Theor Biol. 2009. V. 256. P. 96–103. doi: 10.1016 / j.jtbi.2008.08.017.
4. O’Higgins P., Fitton L., Phillips R., Shi J.F., Liu J., Groening F., Cobb S.N., Fagan M.J. Virtual functional morphology: novel approaches to the study of craniofacial form and function. Evolutionary Biology. 2009. doi: 10.1007/s11692-012-9173-8.
5. Kupczik K. Virtual biomechanics: basic concepts and technical aspects of finite element analysis in vertebrate morphology. Journal of Anthropological Sciences. 2008. V. 86. P. 193–198.
6. Ross CF. Finite element analysis in vertebrate biomechanics. Anat Rec A Discov Mol Cell Evol Biol. 2005 Apr;283(2):253-8. doi: 10.1002/ar.a.20177. PMID: 15754323.
7. Richmond B.G., Wright W., Grosse I., Dechow P.C., Ross C., Spencer M., and Strait D. Finite element analysis in functional morphology. Anat. Rec. 2005. V. 283. P. 259–274. doi: 10.1002/ar.a20169.
8. de Simao-Oliveira D, Dos Santos T, Pinheiro FL, Pretto FA. Assessing the adductor musculature and jaw mechanics of Proterochampsa nodosa (Archosauriformes: Proterochampsidae) through finite element analysis. Anat Rec (Hoboken). 2024 Apr;307(4):1300-1314. doi: 10.1002/ar.25380.
9. Melki LB, Barbosa FHS, Alves-Silva L, Bergqvist LP. Variations in dietary patterns of living sloths revealed by finite element analysis of jaws. J Anat. 2024 Oct;245(4):583-592. doi: 10.1111/joa.14099.
10. Panagiotopoulou O, Robinson D, Iriarte-Diaz J, Ackland D, Taylor AB, Ross CF. Dynamic finite element modelling of the macaque mandible during a complete mastication gape cycle. Philos Trans R Soc Lond B Biol Sci. 2023 Dec 4;378(1891):20220549. doi: 10.1098/rstb.2022.0549.
11. Wilken AT, Schultz JA, Luo ZX, Ross CF. A new biomechanical model of the mammal jaw based on load path analysis. J Exp Biol. 2024 Sep 15;227(18):jeb247030. doi: 10.1242/jeb.247030.
12. Watson PJ, Sharp AC, Choudhary T, Fagan MJ, Dutel H, Evans SE, Groning F. Computational biomechanical modelling of the rabbit cranium during mastication. Sci Rep. 2021 Jun 23;11(1):13196. doi: 10.1038/s41598-021-92558-5.
13. Penrose F, Cox P, Kemp G, Jeffery N. Functional morphology of the jaw adductor muscles in the Canidae. Anat Rec (Hoboken). 2020 Nov;303(11):2878-2903. doi: 10.1002/ar.24391.
14. Nieto-Miranda JJ, Aguilar-Medrano R, Hernandez-Camacho CJ, Peredo CM, Cruz-Escalona VH. Mechanical properties of the California sea lion (Zalophus californianus) and northern elephant seal (Mirounga angustirostris) lower jaws explain trophic plasticity. Anat Rec (Hoboken). 2023 Oct;306(10):2597-2609. doi: 10.1002/ar.25180.
15. Peterson T, Muller GB Developmental finite element analysis of cichlid pharyngeal jaws: Quantifying the generation of a key innovation. PLoS ONE. 2018. 13(1): e0189985. https://doi.org/10.1371/journal.pone.0189985
16. Brunt LH, Roddy KA, Rayfield EJ, Hammond CL. Building Finite Element Models to Investigate Zebrafish Jaw Biomechanics. J Vis Exp. 2016 Dec 3;(118):54811. doi: 10.3791/54811.
17. Толмачева Ю.П., Долид Е.А., Петухов С.Ю., Пашков В.П., Пыхалов А.А. 3D–моделирование и анимация висцерального скелета рыб: тестирование системы четырехзвенных механизмов. Математическая биология и биоинформатика. 2013. Т. 8. № 2. С. 513–519. doi: 10.17537/2013.8.513.
18. Толмачева, Ю. П., Шматкова А.В., Зайдес С.А. Применение метода конечных элементов для визуализации напряженно-деформированного состояния костей рыб// Научная визуализация. – 2019. – Т. 11, № 2. – С. 114-125. – DOI 10.26583/sv.11.2.09.
19. iCATVision 1.8 Developer by ConeBeam Imaging LLC. // Software for visualization of CT scans of the maxillofacial area URL :https://icatvision.software.informer.com/1.8/ (дата обращения: 05/02/2018)
20. XnView 1.98.2 Developer by XnSoft. // Software for viewing and editing images URL : https://www.xnview.com/en/ (дата обращения 15/02/2018)
21. Femap V 10 Developed by Siemens Product Lifecycle Management Software Inc. //System of finite element modeling and postprocessing application URL: http://www.femcomp.com/ (дата обращения: 15/02/2018)
22. Autodesk Maya 2012 Developed by Autodesk, Inc // Software for 3D modeling and animation URL: http://www. autodesk.com/ (дата обращения: 10/03/2018)
23. Patran Developed by MSC Software // System for integrating automated design, modeling, analysis, and evaluation of calculation results. URL: http://www.patran.net/ (дата обращения: 15/02/2018)
24. Dobben W.N. Uber der Kiefermechanismus der Knochenfishe. Archiv neerland. Zoolog. 1935. V. 50. P. 1–72.
25. Yabe M. Comporative osteology and miology of the superfamily Cottoidea (Pisces: Scorpaeniformes), and its philogenetic classification. Reprinted from Memoirs of the Faculty of Fisheries, Hokkaido University. 1985. V. 32. P. 130.
26. Westneat M.W. Feeding mechanics of teleost fishes (Labridae: Perciformes): A test of four-bar linkage models. J. Morph. 1990. V. 205. P. 269–295. doi: 10.1002/jmor1052050304.
27. Ю. П. Толмачева, А. В. Шматкова, Д. Т. Ву, В. В. Кузлякина . Функционирование челюстного аппарата рыб: моделирование и кинематический анализ кривошипно-кулисного механизма // Математическая биология и биоинформатика. - 2018. - Т. 13, № 2. - С. 551-562. DOI 10.17537/2018.13.551.
28. Gregory W.K. Fish skulls. A study of the evolution of natural mechanism. Trans. Amer. Phil. Soc. 1933. V. 23. P. 75-481.
29. Nastran Developed by MSC Software // Software for finite element analysis (FEA) URL: http://www.mscsoftware.ru/products/msc-nastran/ (дата обращения: 17/04/2018)
30. Gosline W.A. Comments on the classification of the percoid fishes. Pacif. Sci. 1966. V. 4. P. 409 418.
31. O’Kamura O. Stadies of the Macrouroid fishes of Japan. Morfology, ecology and philogeny. Rept. U. S. Mar. Biol. Stat. 1970. 32 p.
32. Воскобойникова О.С. Эволюционные преобразования висцерального скелета и вопросы филогении нототениевидных рыб (Nototheniidae). Тр. Зоол. ин-та АН СССР. 1986. Т. 153. С. 46-66.
33. Толмачева, Ю. П. Строение ротового и глоточного аппаратов трёх видов байкальских Cottoidei в связи с их питанием / Ю. П. Толмачева // Вопросы ихтиологии. – 2010. – Т. 50, № 1. – С. 69-76.
34. Tolmacheva, Yu. P., Bun M. M. Structure features and structural transformations of the maxillary bones in the Baikal cottoid fish // Limnology and Freshwater Biology. – 2019. – No. 5. – P. 308-311. – DOI 10.31951/2658-3518-2019-A-5-308.
Application of the Finite Element Method to the Analysis of Adaptive Transformations of the Jaw Apparatus of Fish
Authors: Yu.P. Tolmacheva1,A, T.E. Pomoynitskaya2,A, A.I. Tolmachev3,B, A.V. Chmatkova4,B, S.A. Zaides5,B
A Irkutsk State Agrarian University, Irkutsk, Russia
B Irkutsk National Research Techical University, Irkutsk, Russia
1 ORCID: 0000-0002-4842-8669, tjul78@mail.ru
2 ORCID: 0009-0002-5867-8861, konkova.t@bk.ru
3 ORCID: 0009-0005-1923-5875, tjul78@mail.ru
4 ORCID: 0000-0002-9854-3476, annashmatkova@yandex.ru
5 ORCID: 0000-0002-6555-9321, zsa@istu.edu
Abstract
This paper presents the potential of modern visualization and numerical analysis ap-proaches using the finite element method to study adaptive skeletal deformations in lower vertebrates. The functional analysis of the visceral skeleton of fish was based on the virtual reconstruction of dental CT data into finite element models using engineering design and modeling software (Femap, Nastran, Patran). Visualization of the stress-strain state of ana-tomical structures revealed that their transformation occurs at sites of maximum bone stress concentration and is a consequence of changes in force load during the development of the species' feeding strategy. Overall, the approach used facilitates a more comprehensive analysis of the functional foundations of skeletal structure and adaptive transformations for a given morphology of a particular species.
Keywords: fish, visceocranium, jaw apparatus, morpho-functional analysis, adaptation, stress-strain state (SSS), finite element model (FEM).
1. Wolff.J. Das Gesetz der Transfomation der Knochen. Berlin: Hirschwald. 1892. 235p.
2. Cowin S.C. Wolff’s law of trabecular architecture at remodeling equilitrium. J. Biomech. Engng. 1986. V. 108. P. 83-88.
3. Dumont E.R., Grosse I.R., Slater G.J. Requirements for comparing the performance of finite element models of b Biological structures. J Theor Biol. 2009. V. 256. P. 96–103. doi:10.1016/j.jtbi.2008.08.017.
4. O'Higgins P., Fitton L., Phillips R., Shi J.F., Liu J., Groening F., Cobb S.N., Fagan M.J. Virtual functional morphology: novel approaches to the study of craniofacial form and function. Evolutionary Biology. 2009. doi: 10.1007/s11692-012-9173-8.
5. Kupczik K. Virtual biomechanics: basic concepts and technical aspects of finite element analysis in vertebrate morphology. Journal of Anthropological Sciences. 2008. V. 86. P. 193–198.
6. Ross CF. Finite element analysis in vertebrate biomechanics. Anat Rec A Discov Mol Cell Evol Biol. 2005 Apr;283(2):253-8. doi: 10.1002/ar.a.20177. PMID: 15754323.
7. Richmond B. G., Wright W., Grosse I., Dechow P. C., Ross C., Spencer M., and Strait D. Finite element analysis in functional morphology. Anat. Rec. 2005. V. 283. P. 259–274. doi: 10.1002/ar.a20169.
8. de Simao-Oliveira D, Dos Santos T, Pinheiro FL, Pretto FA. Assessing the adductor musculature and jaw mechanics of Proterochampsa nodosa (Archosauriformes: Proterochampsidae) through finite element analysis. Anat Rec (Hoboken). 2024 Apr;307(4):1300-1314. doi: 10.1002/ar.25380.
9. Melki LB, Barbosa FHS, Alves-Silva L, Bergqvist LP. Variations in dietary patterns of living sloths revealed by finite element analysis of jaws. J Anat. 2024 Oct;245(4):583-592. doi: 10.1111/joa.14099.
10. Panagiotopoulou O, Robinson D, Iriarte-Diaz J, Ackland D, Taylor AB, Ross CF. Dynamic finite element modeling of the macaque mandible during a complete mastication gape cycle. Philos Trans R Soc Lond B Biol Sci. 2023 Dec 4;378(1891):20220549. doi: 10.1098/rstb.2022.0549.
11. Wilken AT, Schultz JA, Luo ZX, Ross CF. A new biomechanical model of the mammal jaw based on load path analysis. J Exp Biol. 2024 Sep 15;227(18):jeb247030. doi: 10.1242/jeb.247030.
12. Watson PJ, Sharp AC, Choudhary T, Fagan MJ, Dutel H, Evans SE, Groning F. Computational biomechanical modeling of the rabbit cranium during mastication. Sci Rep. 2021 Jun 23;11(1):13196. doi:10.1038/s41598-021-92558-5.
13. Penrose F, Cox P, Kemp G, Jeffery N. Functional morphology of the jaw adductor muscles in the Canidae. Anat Rec (Hoboken). 2020 Nov;303(11):2878-2903. doi: 10.1002/ar.24391.
14. Nieto-Miranda JJ, Aguilar-Medrano R, Hernandez-Camacho CJ, Peredo CM, Cruz-Escalona VH. Mechanical properties of the California sea lion (Zalophus californianus) and northern elephant seal (Mirounga angustirostris) lower jaws explain trophic plasticity. Anat Rec (Hoboken). 2023 Oct;306(10):2597-2609. doi: 10.1002/ar.25180.
15. Peterson T, Muller GB (2018) Developmental finite element analysis of cichlid pharyngeal jaws: Quantifying the generation of a key innovation. PLoS ONE 13(1): e0189985. https://doi.org/10.1371/journal.pone.0189985
16. Brunt LH, Roddy KA, Rayfield EJ, Hammond CL. Building Finite Element Models to Investigate Zebrafish Jaw Biomechanics. J Vis Exp. 2016 Dec 3;(118):54811. doi: 10.3791/54811.
17. Tolmacheva Yu.P., Dolid E.A., Petukhov S.Yu., Pashkov V.P., Pykhalov A.A. 3D modeling and animation of the visceral skeleton of fish: testing the system of four-link mechanisms. Mathematical biology and bioinformatics. 2013. Vol. 8. No. 2. P. 513–519. doi: 10.17537/2013.8.513.
18. Tolmacheva, Yu.P., Shmatkova A.V., Zaides S.A. Application of the finite element method for visualization of the stress-strain state of fish bones// Scientific visualization. – 2019. – T. 11, No. 2. – P. 114-125. – DOI 10.26583/sv.11.2.
19. iCATVision 1.8 Developer by ConeBeam Imaging LLC. // Software for visualization of CT scans of the maxillofacial area URL :https://icatvision.software.informer.com/1.8/ (date of access 05/02/2018)
20. XnView 1.98.2 Developer by XnSoft. // Software for viewing and editing images URL : https://www.xnview.com/en/ (date of access 15/02/2018)
21. Femap V 10 Developed by Siemens Product Lifecycle Management Software Inc. //System of finite element modeling and postprocessing application URL: http://www.femcomp.com/ (date of access 15/02/2018)
22. Autodesk Maya 2012 Developed by Autodesk, Inc // Software for 3D modeling and animation URL: http://www. autodesk.com/ (date of access 10/03/2018)
23. Patran Developed by MSC Software // System for integrating automated design, modeling, analysis, and evaluation of calculation results. URL: http://www.patran.net/ (date of access 15/02/2018)
24. Dobben W.N. Uber der Kiefermechanismus der Knochenfishe. Archive neerland. Zoolog. 1935. V. 50. P. 1–72.
25. Yabe M. Comparative osteology and miology of the superfamily Cottoidea (Pisces: Scorpaeniformes), and its phylogenetic classification. Reprinted from Memoirs of the Faculty of Fisheries, Hokkaido University. 1985. V. 32. P. 130.
26. Westneat M.W. Feeding mechanics of teleost fishes (Labridae: Perciformes): A test of four-bar linkage models. J. Morph. 1990. V. 205. P. 269–295. doi: 10.1002/jmor1052050304.
27. Yu. P. Tolmacheva, A. V. Shmatkova, D. T. Wu, V. V. Kuzlyakina. Functioning of the jaw apparatus of fish: modeling and kinematic analysis of the crank-rocker mechanism // Mathematical biology and bioinformatics. - 2018. - Vol. 13, No. 2. - P. 551-562. DOI 10.17537/2018.13.551.
28. Gregory W.K. Fish skulls. A study of the evolution of natural mechanism. Trans. Amer. Phil. Soc. 1933. V. 23. P. 75-481.
29. Nastran Developed by MSC Software // Software for finite element analysis (FEA) URL: http://www.mscsoftware.ru/products/msc-nastran/ (date of access 17/04/2018)
30. Gosline W.A. Comments on the classification of the percoid fishes. Pacific. Sci. 1966. V. 4. P. 409-418.
31. O’Kamura O. Stadies of the Macrouroid fishes of Japan. Morfology, ecology and phylogeny. Rept. U. S. Mar. Biol. Stat. 1970. 32 p.
32. Voskoboynikova O.S. Evolutionary transformations of the visceral skeleton and questions of phylogeny of nototheniidae fishes. Tr. Zool. Institute of the USSR Academy of Sciences. 1986. T. 153. pp. 46-66.
33. Tolmacheva, Yu. P. Structure of the oral and pharyngeal apparatus of three species of Baikal Cottoidei in connection with their nutrition / Yu. P. Tolmacheva // Questions of ichthyology. - 2010. - V. 50, No. 1. - P. 69-76.
34. Tolmacheva, Yu. P., Bun M. M. Structure features and structural transformations of the maxillary bones in the Baikal cottoid fish // Limnology and Freshwater Biology. – 2019. – No. 5. – P. 308-311. – DOI 10.31951/2658-3518-2019-A-5-308.